Alan: Hücresel metabolizma · Düzey: İleri IBO
Moleküler yol
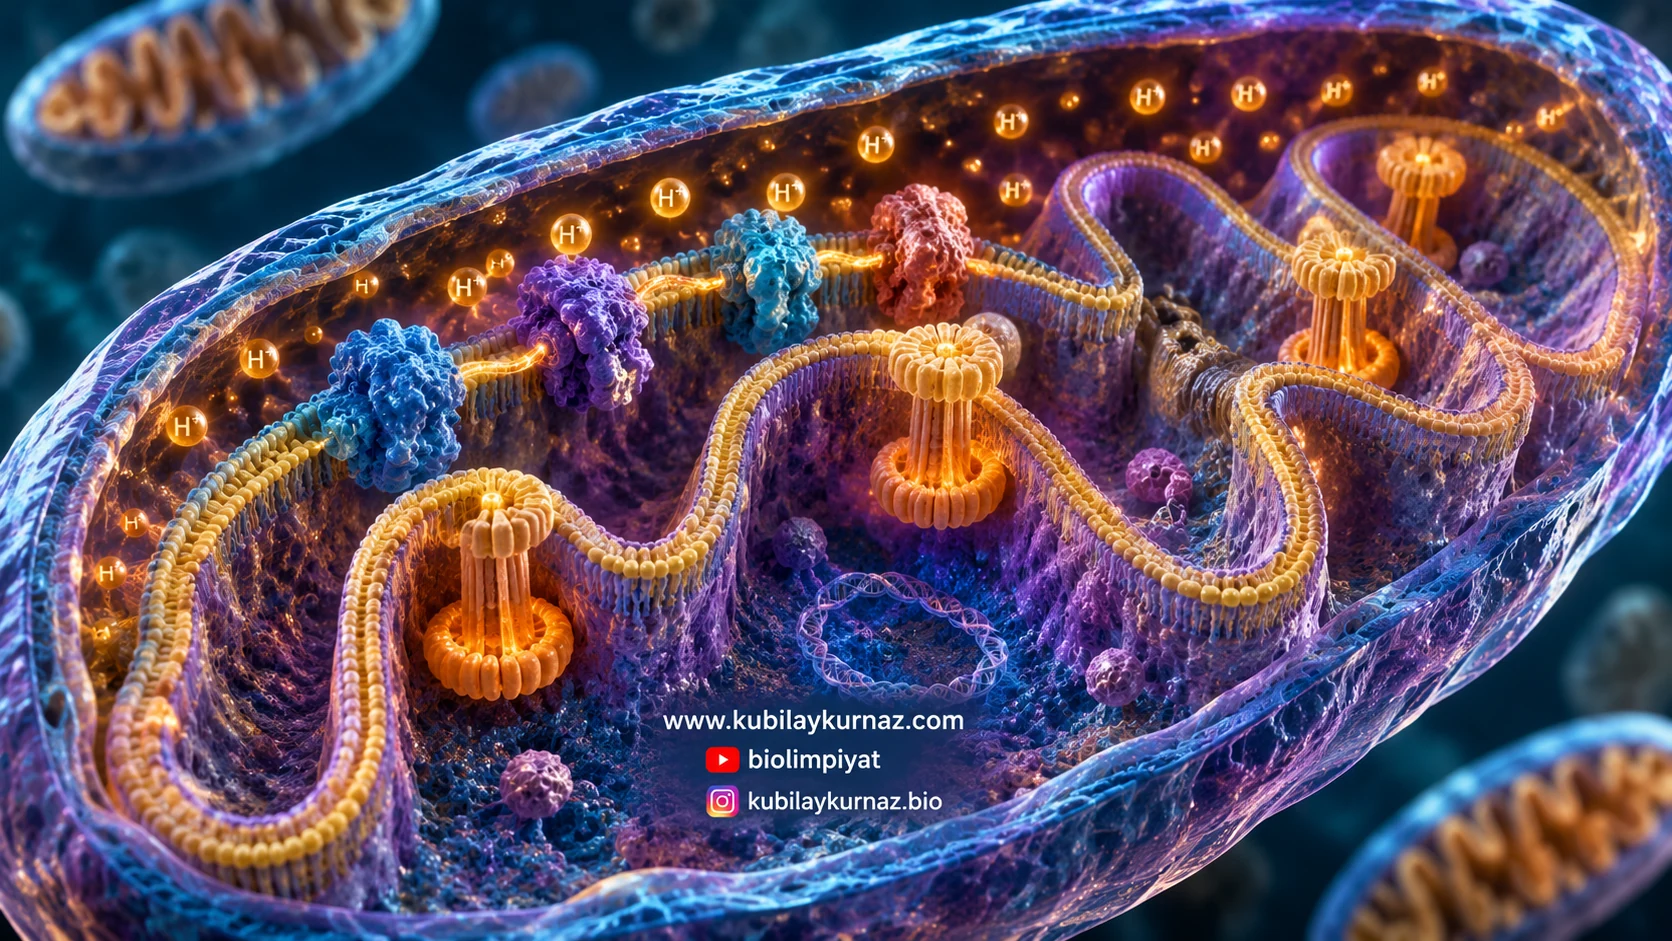
Mitokondride kompleks I, NADH elektronlarını ubikinona aktarırken proton pompalar. Kompleks II, süksinattan gelen elektronları ubikinona verir ama proton pompalamaz. Kompleks III elektronları sitokrom c'ye, kompleks IV oksijene aktarır. NADH kaynaklı elektron çifti için klasik memeli mitokondri modelinde yaklaşık 10 proton; kompleks II üzerinden giren çift için yaklaşık 6 proton zarlar arası boşluğa taşınmasıyla ilişkilidir. Değerler organizma ve koşullara bağlıdır.
Proton itici kuvvet elektriksel membran potansiyeli ve pH farkı bileşenlerini içerir. ATP sentazın F₀ bölgesinden proton geçişi dönme hareketini destekler; F₁'de ATP üretimi için konformasyon değişimi gerçekleşir. ATP/ADP ve fosfatın taşıması da enerji maliyetlidir. Yaklaşık 2,5 ATP/NADH ve 1,5 ATP/FADH₂ sık kullanılan hesap değerleridir, evrensel kesin sayılar değildir.
Özgün deney verileri
| Koşul | O₂ tüketimi (nmol/dk) | ATP üretimi (nmol/dk) |
|---|---|---|
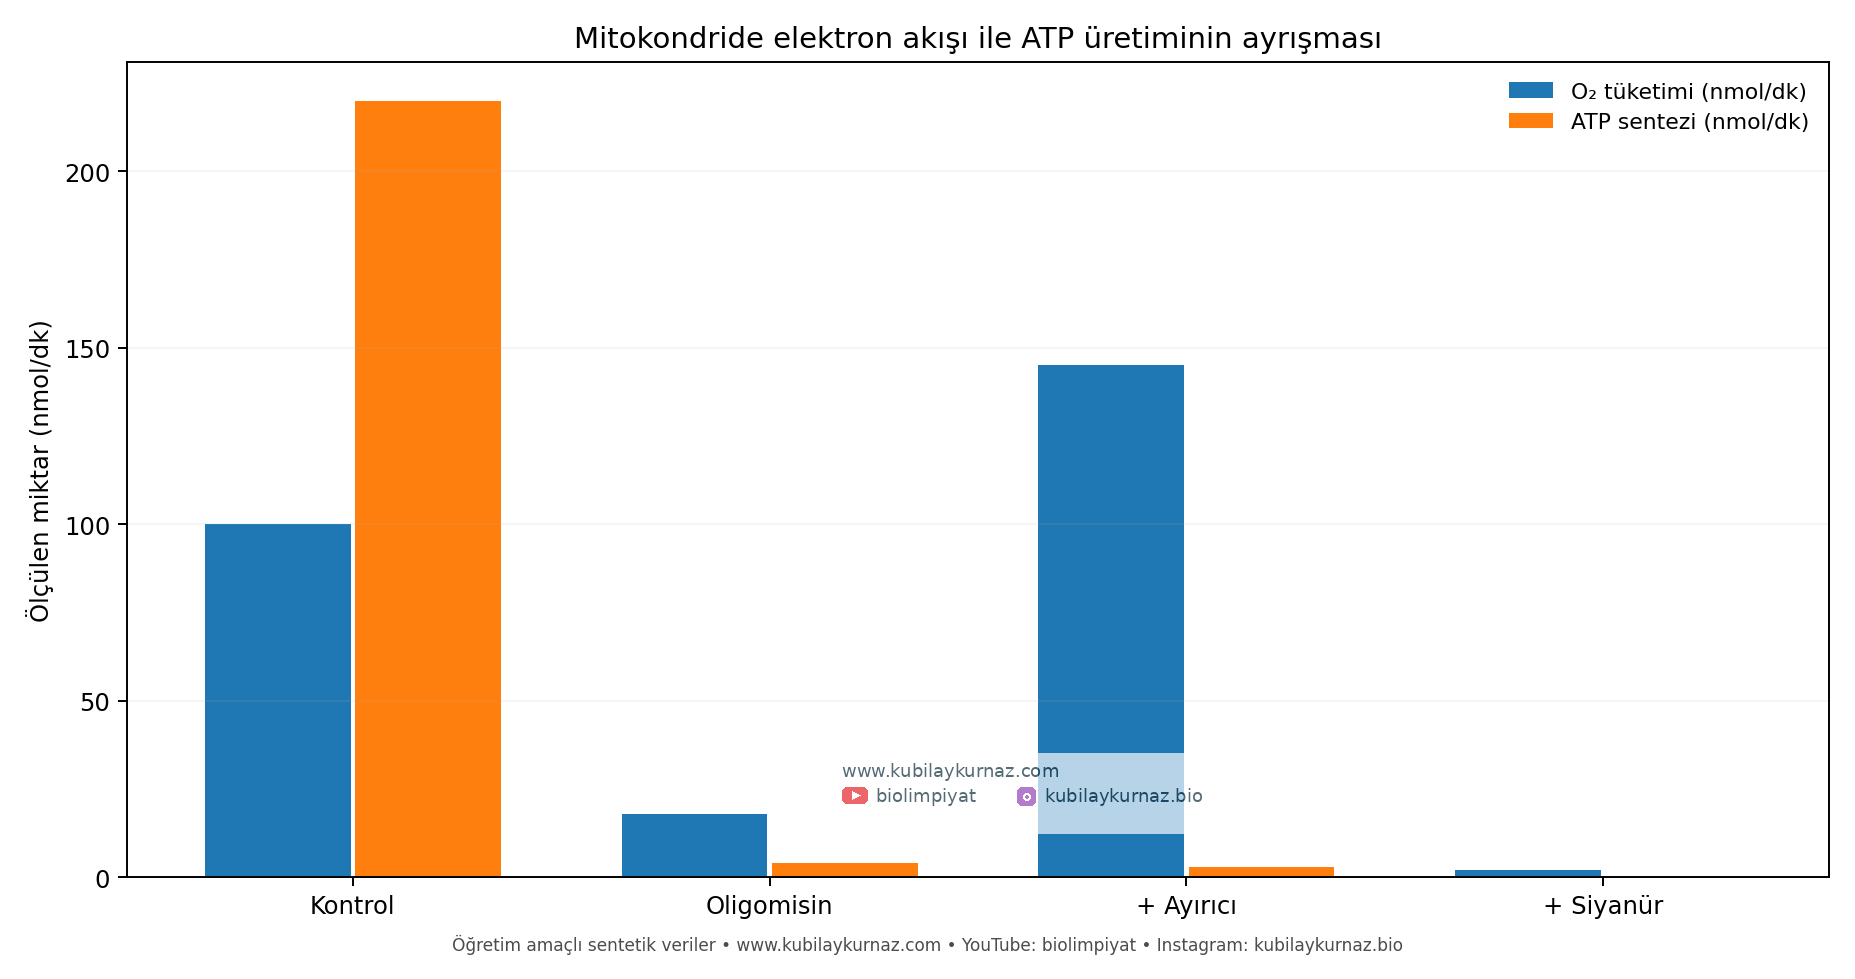
| ADP + uygun substrat | 100 | 220 |
| + oligomisin | 18 | 4 |
| + oligomisin + ayırıcı | 145 | 3 |
| + siyanür | 2 | 0 |
Veriler sentetiktir. Oligomisin ATP sentaz kanalını engeller; gerilim birikince elektron akışı da kısıtlanabilir. Protonofor ayırıcı gradyanı dağıtır; uygun substrat ve oksijen varsa elektron akışı ve oksijen tüketimi artabilir ama ATP üretimi düşük kalır. Siyanürün kompleks IV'e etkisi terminal elektron akışını sınırlar. Oksijen tüketiminin artması, ATP üretiminin mutlaka arttığı anlamına gelmez.
IBO sorusu: Oligomisin varlığında ayırıcı eklenince O₂ tüketiminin artması için hangisi gereklidir? A) Aktif kompleks IV ve kullanılabilir elektron donörü/oksijen B) ATP sentazın açılması C) Proton pompalanmaması D) DNA eşlenmesi E) Kompleks II'nin proton pompalaması. Cevap A.
Deney eleştirisi: İzole mitokondrinin oksijen tüketimi hücrenin toplam metabolik yanıtıyla aynı değildir; substrat tedariki, doku canlılığı, mitokondri sayısı ve normalizasyon incelenmelidir.
İleri kaynak: https://www.ncbi.nlm.nih.gov/books/NBK26904/
Derin IBO eki — redoks ve proton stokiyometrisi
Elektron akışı termodinamik olarak elverişli redoks çiftleri arasında ilerler. ΔG°′=−nFΔE°′ bağıntısında elektron vericisinin ve alıcısının standart indirgenme potansiyellerinden hesaplanan ΔE, aktarımın enerji bütçesiyle ilişkilidir. Bir taşıyıcının elektronu alması ve vermesi, uygun yapısal düzen içinde protonun farklı taraflardan bağlanıp bırakılmasıyla bağlanabilir; ubikinonun lipid fazında taşınması bu koordinasyon için önemlidir. İç membranın protonlara düşük geçirgenliği, oluşan potansiyelin korunması için gereklidir.
Membran boyunca protonun taşınması hem elektriksel hem pH farkına bağlıdır. Proton için serbest enerji değişimi ΔµH⁺ = RT ln([H⁺]hedef/[H⁺]başlangıç)+F(ψhedef−ψbaşlangıç) biçiminde yazılabilir. 37 °C'de bir pH birimi yaklaşık 61,5 mV'luk kimyasal potansiyel eşdeğerine karşılık gelir. İç ve dış tarafların hangi yön için tanımlandığı işaretleri değiştirir; yalnız '+' ve '−' işaretini ezberlemek yerine protonun hangi yöne hareket ettiğini belirlemek gerekir.
Neden ATP verimi kesin tam sayı değildir?
Memeli mitokondrisi için NADH kaynaklı elektron çiftinde yaklaşık 10 H⁺, kompleks II üzerinden girişte yaklaşık 6 H⁺ dışarı taşınması modeli kullanılır. ATP sentazın bir tam dönüşünde taşınan proton sayısı c-halkasındaki alt birim sayısına bağlıdır. Memeli mitokondrisinde sekiz c alt birimli halka için sentaz düzeyinde 8 H⁺ başına 3 ATP elde edilir. ATP/ADP değişimi ve fosfatın alınması dâhil edildiğinde hücreye sağlanan ATP'nin toplam enerji maliyeti artar. Bu nedenle pratik muhasebede yaklaşık P/O=2,5 (NADH) ve P/O=1,5 (FADH₂ eşdeğeri) kullanılsa da ölçülen oranlar substrat, proton sızıntısı ve fizyolojik koşullara göre değişir. Glukoz başına toplam verim, sitozolik NADH elektronlarının aktarım yolu ve zarın eşleşme verimi gibi etkenlere bağlıdır. Klasik P/O gösteriminde O, indirgenen oksijen atomu eşdeğeridir (½ O₂). Moleküler O₂ başına verilen ATP/O₂ oranı bu P/O değerinin iki katıdır. İleri okuma · ATP sentazın proton maliyeti
Deney çözümünde inhibitör matrisi
Kompleks I inhibitörü ile muamele edilen mitokondri, kompleks II'den beslenen süksinat gibi bir giriş kaynağı sağlandığında bazı koşullarda elektron akışını sürdürebilir. Kompleks III veya IV blokajında, terminal yolağa elektron verilemediği için kompleks II substratının eklenmesi normal O₂ tüketimini kurtarmaz. Oligomisin ise proton dönüşünü engelleyerek yüksek proton itici kuvvet nedeniyle elektron akışını ikincil olarak yavaşlatabilir. Bir ayırıcı, oligomisin nedeniyle oluşan karşı basıncı dağıtıp O₂ tüketimini geri yükseltebilir. Ancak kompleks IV blokajına ayırıcı eklemek oksijen tüketimini geri getirmez.
Özgün bir deneyde A koşulunda O₂ tüketimi 100, ATP oluşumu 220; B koşulunda O₂ 18, ATP 4; C koşulunda O₂ 145, ATP 3 olarak raporlansın. B ve C arasındaki fark, elektron akışının ATP senteziyle zorunlu biçimde aynı yönde değişmediğini gösterir. Bunun açıklaması için membran potansiyeli (örneğin uygun floresan prob), NADH/NAD⁺ redoks oranı ve ATP sentezi ayrı ölçülür. Floresan prob sonuçları da prob yüklenmesi, pH duyarlılığı ve membran bütünlüğüyle kalibre edilmelidir.
Çok adımlı özgün IBO sorusu
Öncül: Mitokondrilerde pirüvat/malat ile yüksek oksijen tüketimi varken kompleks I baskılanıyor. Sonra süksinat veriliyor ve oksijen tüketimi kısmen geri geliyor. Son olarak siyanür eklenince tüketim çok düşüyor.
1. Süksinat neden kısmi kurtarma sağlayabilir? Yanıt: Kompleks II üzerinden ubikinon havuzuna elektron verir ve kompleks I'in atlanmasını sağlar.
2. Süksinat neden kompleks III/IV blokajını gideremez? Yanıt: Elektronlar ortak aşağı akım zincirinde yine bloke olur.
3. Süksinattan giren elektron başına beklenen proton pompalama sayısı neden NADH'den daha azdır? Yanıt: Kompleks II proton pompalamaz; kompleks I'in proton pompalama katkısı atlanır.
4. O₂ tüketimi normale dönse bile ATP sentezinin düşük kalmasının en az iki nedeni nedir? Yanıt: Artmış proton sızıntısı/ayırıcı etki ve ATP sentaz/ADP taşıma kısıtlaması. Ayrıca mitokondri sayısı ve substrat seçimi sonuçları değiştirebilir.
5. Mitokondri sayısını farklı tüplerde normalize etmek için ne tür ölçümler gerekir? Yanıt: En azından protein miktarı veya uygun organel markerleri ve bağımsız biyolojik tekrar; yalnız O₂ tüketimini başlangıç sabiti kabul etmek yeterli değildir.